
 English
 中文 (中国)
3. Kết quả
3.1. Hiệu suất tăng trưởng và thể lực cá thể
Sau 35 ngày nuôi ở nhiệt độ 28 °C, cá được cho ăn khẩu phần bổ sung 2% Spirulina (SP), 1% hạt thì là đen (BC), 1% SP và 0,75% BC đều có khối lượng cơ thể cuối kỳ (FBW), tăng khối lượng (WG) và tốc độ tăng trưởng đặc hiệu (SGR) cao hơn đáng kể so với nhóm đối chứng (P < 0,05). Tỷ lệ chuyển đổi thức ăn (FCR) ở nhóm đối chứng cao hơn đáng kể so với các nhóm được bổ sung (P < 0,05), trong đó nhóm bổ sung 2% SP có FCR thấp nhất. Các chỉ số thể chất, đặc biệt là chỉ số nội tạng (VSI) và chỉ số gan (HSI), ở các nhóm bổ sung 2% SP và 0,75% BC cao hơn đáng kể so với nhóm đối chứng (P < 0,05). Trong đó, nhóm bổ sung 0,75% BC có giá trị HSI cao nhất (Bảng 2). Sau 15 ngày tiếp xúc với nhiệt độ cao (34 °C), cá được cho ăn các khẩu phần bổ sung 2% SP, 1% SP, 0,75% BC và 1% BC đều có khối lượng cơ thể cuối kỳ, mức tăng khối lượng và tỷ lệ tăng khối lượng cao hơn đáng kể so với nhóm đối chứng (P < 0,05). Tốc độ tăng trưởng đặc hiệu (SGR) ở hai nhóm bổ sung 0,75% BC và 1% BC tương đương nhau, đồng thời cao hơn đáng kể so với nhóm bổ sung 1% SP; trong khi đó, nhóm bổ sung 2% SP đạt SGR cao nhất. Đối với các chỉ số thể chất, VSI và HSI ở nhóm bổ sung 0,75% BC cao hơn đáng kể so với nhóm đối chứng (P < 0,05), trong khi nhóm bổ sung 2% SP có chỉ số tuyến sinh dục (GSI) cao nhất. Nhìn chung, việc bổ sung SP và BC vào khẩu phần ăn giúp cải thiện đáng kể hiệu suất tăng trưởng và khả năng sử dụng thức ăn của cá so với nhóm đối chứng, cả trong điều kiện nhiệt độ thông thường (28 °C) và khi tiếp xúc với nhiệt độ cao (34 °C) (P < 0,05).
Bảng 2. Các chỉ số tăng trưởng của cá rô phi trong giai đoạn thí nghiệm với các chế độ bổ sung thức ăn khác nhau (Trung bình ± Độ lệch chuẩn) a .
| Thông số | Tiếp xúc với nhiệt độ |
Nghiệm thức | ||||
| Đối chứng | SP 1% | SP 2% | BC 0,75% | BC 1% | ||
| Trọng lượng cơ thể ban đầu (g) | 57,34 ± 10,38 a | 58,46 ± 6,62 a | 57,57 ± 7,74 a | 60,88 ± 9,32 a | 59,88 ± 7,45 a | |
| Trọng lượng cơ thể cuối cùng (g) | 28 °C | 74,44 ± 5,98 a | 83,63 ± 5,06 b | 91,72 ± 8,16 c | 82,90 ± 9,84 b | 90,30 ± 7,35 bc |
| 34 °C | 89,21 ± 13,90 a | 96,40 ± 9,77 ab | 97,74 ± 7,88 b | 97,38 ± 7,16 b | 95,58 ± 5,99 b | |
| Tăng trọng (g) | 28 °C | 19,85 ± 2,40 a | 25,22 ± 3,08 ab | 34,15 ± 8,43 c | 22,02 ± 2,64 a | 30,41 ± 9,76 b |
| 34 °C | 34,61 ± 6,55 a | 37,94 ± 8,27 b | 40,17 ± 8,5 bc | 36,51 ± 9,96 ab | 35,71 ± 6,96 b | |
| % Tăng trọng (g) | 28 °C | 36,84 ± 6,64 a | 43,96 ± 8,89 bc | 61,77 ± 5,42 c | 36,87 ± 6,90 a | 52,56 ± 13,54 b |
| 34 °C | 63,27 ± 12,33 a | 65,85 ± 15,32 ab | 73,67 ± 13,76 b | 62,61 ± 14,87 a | 61,00 ± 12,43 a | |
| SGR (%/ngày) | 28 °C | 0,54 ± 0,08 a | 0,63 ± 0,11 ab | 0,88 ± 0,13 c | 0,54 ± 0,09 a | 0,72 ± 0,12 b |
| 34 °C | 0,54 ± 0,12 a | 0,55 ± 0,12 a | 0,58 ± 0,11 ab | 0,63 ± 0,10 b | 0,63 ± 0,10 b | |
| FCR | 28 °C | 0,64 ± 0,07 a | 0,50 ± 0,06 bc | 0,41 ± 0,18 a | 0,57 ± 0,07 cd | 0,45 ± 0,17 b |
| 34 °C | 0,62 ± 0,12 b | 0,64 ± 0,13 b | 0,58 ± 0,10 a | 0,56 ± 0,10 a | 0,57 ± 0,08 ab | |
| VSI | 28 °C | 3,14 ± 0,60 a | 3,43 ± 0,56 a | 3,76 ± 0,92 a | 3,64 ± 0,60 a | 3,74 ± 0,93 a |
| 34 °C | 2,89 ± 2,06 a | 2,82 ± 0,79 a | 3,12 ± 0,54 b | 3,33 ± 0,57 c | 3,29 ± 0,59 c | |
| HSI | 28 °C | 1,22 ± 0,19 a | 1,17 ± 0,53 a | 1,39 ± 0,50 a | 2,15 ± 0,74 b | 1,50 ± 0,34 a |
| 34 °C | 0,76 ± 0,39 a | 0,88 ± 0,29 a | 0,79 ± 0,36 a | 1,05 ± 0,29 b | 0,78 ± 0,26 a | |
| GSI | 28 °C | 1,30 ± 0,10 b | 1,30 ± 0,10 b | 1,30 ± 0,20 c | 1,80 ± 0,30 c | 2,10 ± 0,20 c |
| 34 °C | 0,30 ± 0,10 a | 1,20 ± 0,30 b | 1,30 ± 0,20 b | 0,50 ± 0,30 a | 0,50 ± 0,20 a | |
a Các giá trị có chỉ số trên khác nhau trong cùng một hàng là khác biệt đáng kể (p ≤ 0,05).
3.2. Thay đổi các thông số sinh hóa huyết thanh
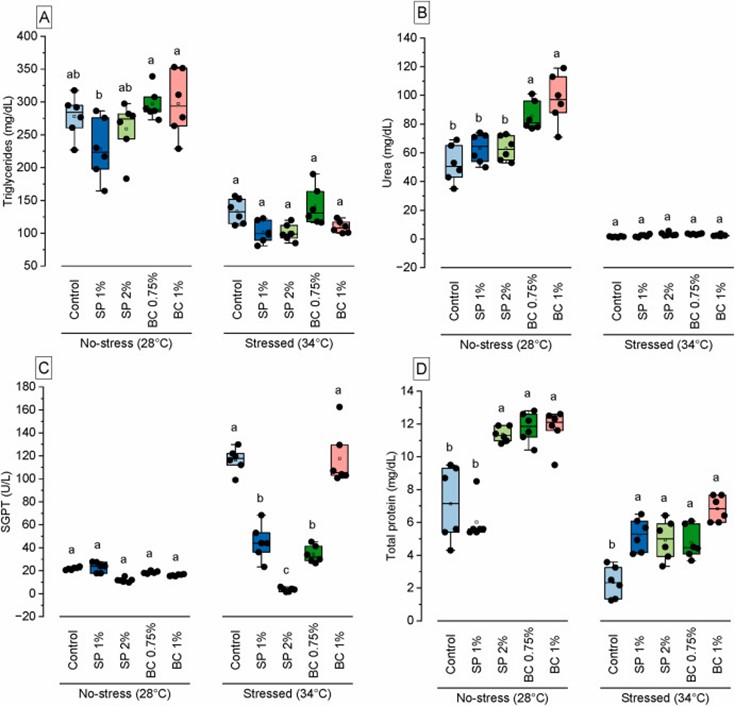
Ở nhiệt độ 28 °C, cá được cho ăn khẩu phần bổ sung 1% SP có hàm lượng triglyceride thấp hơn đáng kể so với các nhóm còn lại (P < 0,05). Tuy nhiên, sau 15 ngày tiếp xúc với nhiệt độ cao (34 °C), không ghi nhận sự khác biệt có ý nghĩa thống kê về hàm lượng triglyceride giữa các nhóm khẩu phần, mặc dù nhóm bổ sung 0,75% BC có xu hướng đạt giá trị cao hơn. Nhìn chung, hàm lượng triglyceride giảm ở tất cả các nhóm sau khi tiếp xúc với nhiệt độ cao so với các nhóm được nuôi ở 28 °C với cùng khẩu phần ăn (Hình 2A). Trong điều kiện không bị stress nhiệt (28 °C), hàm lượng urê ở các nhóm đối chứng, bổ sung 1% SP và 2% SP thấp hơn đáng kể so với hai nhóm bổ sung 0,75% BC và 1% BC (P < 0,05). Tuy nhiên, sau 15 ngày tiếp xúc với nhiệt độ cao (34 °C), hàm lượng urê giảm mạnh ở tất cả các nhóm so với các nhóm được nuôi ở 28 °C với cùng khẩu phần thí nghiệm (Hình 2B). Đối với enzyme transaminase glutamic-pyruvic huyết thanh (SGPT), không ghi nhận ảnh hưởng đáng kể của khẩu phần ăn ở cá được nuôi trong điều kiện nhiệt độ 28 °C. Tuy nhiên, vào cuối giai đoạn tiếp xúc với nhiệt độ cao, hàm lượng SGPT ở các nhóm bổ sung 1% SP, 2% SP và 0,75% BC thấp hơn đáng kể (P < 0,05) (Hình 2C). Hàm lượng protein tổng số (TP) ở các nhóm bổ sung 1% SP và đối chứng thấp hơn đáng kể, trong khi các nhóm bổ sung 2% SP, 0,75% BC và 1% BC có giá trị cao hơn đáng kể (P < 0,05). Sau 15 ngày tiếp xúc với nhiệt độ cao, hàm lượng TP tăng đáng kể ở tất cả các nhóm bổ sung SP và BC so với nhóm đối chứng (Hình 2D). Nhìn chung, hàm lượng triglyceride, urê, SGPT và protein tổng số có sự biến động đáng kể (P < 0,05), đồng thời chịu ảnh hưởng rõ rệt của thời gian gây stress và nhiệt độ tiếp xúc (Bảng 3).
Bảng 3. Kết quả kiểm định MANOVA hai chiều của các thông số đo được ở cá rô phi được nuôi trong các điều kiện nhiệt độ và khẩu phần ăn khác nhau. Giá trị xác suất (p) < 0,05 được coi là có ý nghĩa thống kê.
| Các thông số đo được | Nhiệt độ | Khẩu phần ăn | Nhiệt độ∗Khẩu phần ăn | |||||||||||||
| DF | DF (Lỗi) | Thống kê F | giá trị p | Π 2 (Một phần) | DF | DF (Lỗi) | Thống kê F | giá trị p | Π 2 (Một phần) | DF | DF (Lỗi) | Thống kê F | giá trị p | Π 2 (Một phần) | ||
| Các thông số huyết học | WBC | 1 | 50 | 1365,527 | 0,000 | 0.965 | 4 | 50 | 232,651 | 0,000 | 0.949 | 4 | 50 | 270.881 | 0,000 | 0.956 |
| RBC | 1 | 50 | 2,866 | 0,097 | 0,054 | 4 | 50 | 0.719 | 0.583 | 0,054 | 4 | 50 | 2.319 | 0,070 | 0.157 | |
| HGB | 1 | 50 | 2.421 | 0.126 | 0,046 | 4 | 50 | 1.790 | 0.146 | 0,125 | 4 | 50 | 9.228 | 0,000 | 0,425 | |
| HCT | 1 | 50 | 7.994 | 0,007 | 0.138 | 4 | 50 | 5.320 | 0,001 | 0,299 | 4 | 50 | 4,435 | 0,004 | 0.262 | |
| MCV | 1 | 50 | 3.230 | 0,078 | 0,061 | 4 | 50 | 1,997 | 0.109 | 0.138 | 4 | 50 | 2.441 | 0,059 | 0.163 | |
| MCH | 1 | 50 | 1,738 | 0.193 | 0,034 | 4 | 50 | 2,869 | 0,032 | 0.187 | 4 | 50 | 4.141 | 0,006 | 0.249 | |
| MCHC | 1 | 50 | 73,848 | 0,000 | 0.596 | 4 | 50 | 50,594 | 0,000 | 0.802 | 4 | 50 | 44.540 | 0,000 | 0.781 | |
| RDWC | 1 | 50 | 23.906 | 0,000 | 0.323 | 4 | 50 | 41,496 | 0,000 | 0.769 | 4 | 50 | 62.300 | 0,000 | 0.833 | |
| RDWS | 1 | 50 | 78,965 | 0,000 | 0.612 | 4 | 50 | 46,722 | 0,000 | 0.789 | 4 | 50 | 12.155 | 0,000 | 0,493 | |
| PLT | 1 | 50 | 0.111 | 0.741 | 0,002 | 4 | 50 | 6.741 | 0,000 | 0,350 | 4 | 50 | 16.322 | 0,000 | 0.566 | |
| Đường kính noãn bào | Chất nhiễm sắc nhân | 1 | 50 | 10.960 | 0,002 | 0,180 | 4 | 50 | 10.876 | 0,000 | 0.465 | 4 | 50 | 21.866 | 0,000 | 0.636 |
| Giai đoạn quanh nhân | 1 | 50 | 24.521 | 0,000 | 0.329 | 4 | 50 | 4.417 | 0,004 | 0.261 | 4 | 50 | 18.092 | 0,000 | 0.591 | |
| Giai đoạn non tháng | 1 | 50 | 4.555 | 0,038 | 0,083 | 4 | 50 | 51.039 | 0,000 | 0.803 | 4 | 50 | 25.556 | 0,000 | 0.672 | |
| giai đoạn trưởng thành | 1 | 50 | 36.887 | 0,000 | 0,425 | 4 | 50 | 9.107 | 0,000 | 0.421 | 4 | 50 | 55,822 | 0,000 | 0.817 | |
| chất chuyển hóa trong huyết thanh | TP | 1 | 50 | 150,128 | 0,000 | 0,750 | 4 | 50 | 25.019 | 0,000 | 0.667 | 4 | 50 | 8,756 | 0,000 | 0.412 |
| Triglyceride | 1 | 50 | 460.121 | 0,000 | 0.902 | 4 | 50 | 7.879 | 0,000 | 0.387 | 4 | 50 | 1,642 | 0.178 | 0.116 | |
| Urê | 1 | 50 | 3058,672 | 0,000 | 0.984 | 4 | 50 | 15.211 | 0,000 | 0.549 | 4 | 50 | 3,977 | 0,007 | 0.241 | |
| SGPT | 1 | 50 | 127,391 | 0,000 | 0.718 | 4 | 50 | 145.202 | 0,000 | 0.921 | 4 | 50 | 84.085 | 0,000 | 0.871 | |
| Tần suất trưởng thành của noãn bào | giai đoạn trưởng thành | 1 | 50 | 0.791 | 0.378 | 0,016 | 4 | 50 | 10.530 | 0,000 | 0.457 | 4 | 50 | 10.241 | 0,000 | 0,450 |
| Giai đoạn non tháng | 1 | 50 | 10.698 | 0,002 | 0.176 | 4 | 50 | 9.609 | 0,000 | 0.435 | 4 | 50 | 3.164 | 0,021 | 0.202 | |
| Giai đoạn quanh nhân | 1 | 50 | 52.163 | 0,000 | 0.511 | 4 | 50 | 1.490 | 0.219 | 0.106 | 4 | 50 | 22.552 | 0,000 | 0.643 | |
| Chất nhiễm sắc nhân | 1 | 50 | 1.171 | 0.284 | 0,023 | 4 | 50 | 7.860 | 0,000 | 0.386 | 4 | 50 | 22.837 | 0,000 | 0.646 | |
| Hình thái ruột | VW | 1 | 80 | 57.709 | 0,000 | 0.419 | 4 | 80 | 28.148 | 0,000 | 0.585 | 4 | 80 | 7.236 | 0,000 | 0.266 |
| VA | 1 | 80 | 51.351 | 0,000 | 0.391 | 4 | 80 | 15.582 | 0,000 | 0.438 | 4 | 80 | 14.869 | 0,000 | 0.426 | |
| CD | 1 | 80 | 2012.475 | 0,000 | 0.962 | 4 | 80 | 2,657 | 0,039 | 0.117 | 4 | 80 | 3.118 | 0,019 | 0.135 | |
| TW | 1 | 80 | 915.124 | 0,000 | 0.920 | 4 | 80 | 10.668 | 0,000 | 0.348 | 4 | 80 | 5.660 | 0,000 | 0.221 | |
| MF | 1 | 80 | 267.298 | 0,000 | 0.770 | 4 | 80 | 16.601 | 0,000 | 0.454 | 4 | 80 | 5.033 | 0,001 | 0.201 | |
| GC | 1 | 80 | 25.898 | 0,000 | 0.245 | 4 | 80 | 28,593 | 0,000 | 0.588 | 4 | 80 | 20.346 | 0,000 | 0.504 | |
| Kết quả MANOVA (lambda của Wilks, λ) | ||||||||||||||||
| Các hiệu ứng | 18 | 33 | 727,865 | 0,000 | 0.997 | 72 | 132.12 | 34,751 | 0,000 | 0.947 | 72 | 132.12 | 29,762 | 0,000 | 0.939 | |
3.3. Thay đổi các thông số huyết học
3.3.1. Hồng cầu, Bạch cầu, Hemoglobin, Hematocrit
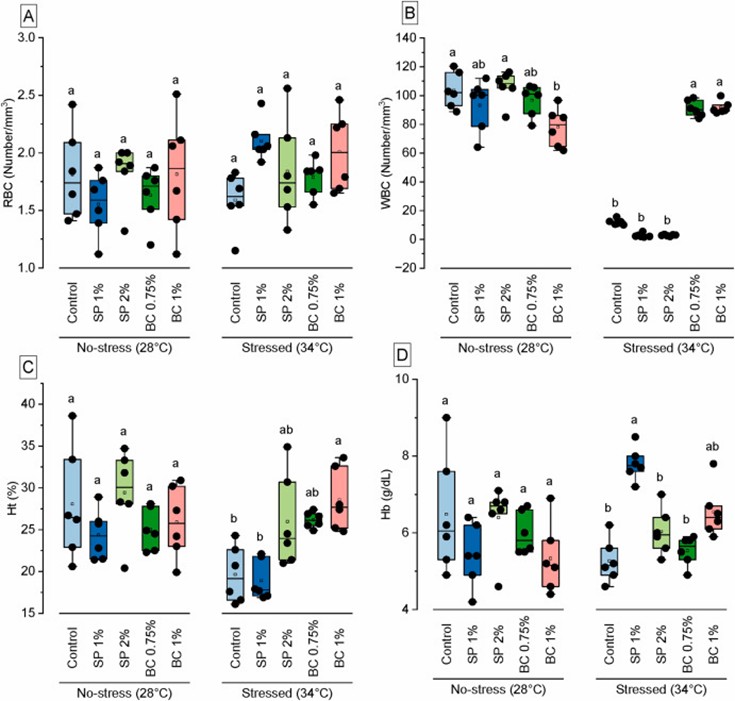
Trước khi bắt đầu giai đoạn gây stress nhiệt, số lượng hồng cầu (RBC) không có sự khác biệt đáng kể giữa các nhóm khẩu phần ăn. Tuy nhiên, sau 15 ngày tiếp xúc với nhiệt độ cao (34 °C), số lượng RBC ở nhóm bổ sung 1% SP cao hơn so với nhóm đối chứng (Hình 3A). Đối với số lượng bạch cầu (WBC), trước khi gây stress nhiệt ở 28 °C, giá trị này ở nhóm bổ sung 1% BC thấp hơn đáng kể so với nhóm đối chứng. Ngược lại, sau 15 ngày tiếp xúc với nhiệt độ 34 °C, số lượng WBC ở hai nhóm bổ sung 0,75% BC và 1% BC cao hơn đáng kể so với nhóm đối chứng và hai nhóm bổ sung SP (1% và 2%) (Hình 3B). Giá trị hematocrit không chịu ảnh hưởng đáng kể của khẩu phần ăn trong giai đoạn nuôi ở điều kiện không có stress nhiệt. Tuy nhiên, sau khi tiếp xúc với nhiệt độ cao, giá trị hematocrit tăng ở các nhóm bổ sung 2% SP, 0,75% BC và 1% BC (Hình 3C). Đối với nồng độ hemoglobin, trước khi gây stress nhiệt, các nhóm bổ sung 2% SP, 0,75% BC và 1% BC có giá trị cao hơn. Sau 15 ngày tiếp xúc với nhiệt độ cao, nồng độ hemoglobin ở nhóm bổ sung 1% SP cao hơn đáng kể so với nhóm đối chứng (Hình 3D). Nhìn chung, cả bốn chỉ tiêu huyết học gồm RBC, WBC, hematocrit và hemoglobin đều chịu ảnh hưởng đáng kể của khẩu phần ăn, nhiệt độ tiếp xúc cũng như sự tương tác giữa hai yếu tố này (P < 0,05) (Bảng 3).
3.3.2. Thay đổi về MCV, MCH và MCHC
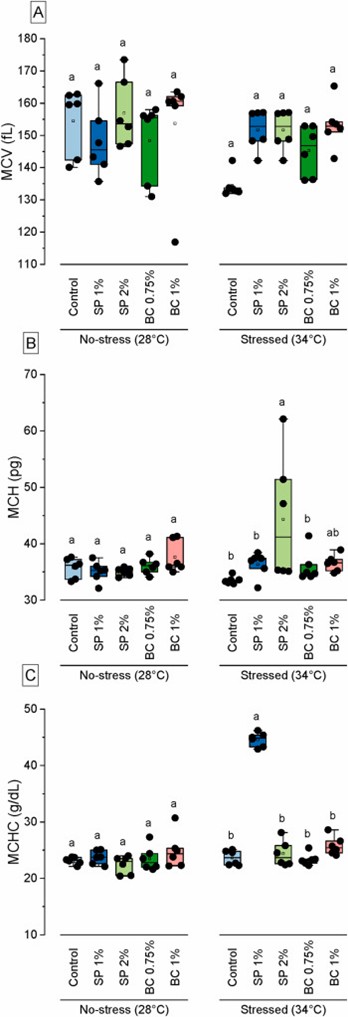
Trong giai đoạn nuôi ở điều kiện không có stress nhiệt (28 °C), thể tích trung bình hồng cầu (MCV) ở nhóm bổ sung 2% SP có xu hướng cao hơn so với các nhóm còn lại, tuy nhiên sự khác biệt không có ý nghĩa thống kê. Ngược lại, sau khi tiếp xúc với nhiệt độ cao (34 °C), nhóm đối chứng có giá trị MCV thấp hơn so với cả bốn nhóm được bổ sung SP và BC (Hình 4A). Sau 35 ngày cho ăn các khẩu phần thí nghiệm, lượng hemoglobin trung bình trong hồng cầu (MCH) không có sự khác biệt đáng kể giữa các nhóm. Tuy nhiên, sau giai đoạn tiếp xúc với nhiệt độ cao, nhóm bổ sung 2% SP có giá trị MCH cao hơn đáng kể so với các nhóm còn lại (Hình 4B). Đối với nồng độ hemoglobin trung bình trong hồng cầu (MCHC), nhóm bổ sung 1% SP có giá trị cao hơn đáng kể so với các nhóm khẩu phần khác (Hình 4C). Nhìn chung, các chỉ số MCV, MCH và MCHC chịu ảnh hưởng đáng kể của cả khẩu phần ăn và nhiệt độ tiếp xúc (Bảng 3).
3.3.3. Thay đổi về RDWC, RDWS và PLT
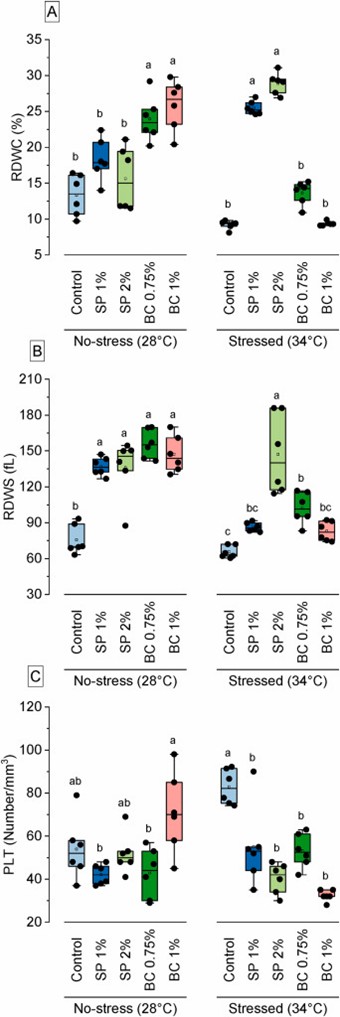
Vào cuối giai đoạn nuôi ở điều kiện không có stress nhiệt (28 °C), hệ số biến thiên độ phân bố kích thước hồng cầu (RDW-CV) ở các nhóm bổ sung 0,75% BC và 1% BC cao hơn đáng kể so với nhóm đối chứng và hai nhóm bổ sung còn lại (P < 0,05). Ngược lại, sau giai đoạn tiếp xúc với nhiệt độ cao (34 °C), RDW-CV ở hai nhóm bổ sung 1% SP và 2% SP cao hơn đáng kể so với ba nhóm còn lại (P < 0,05) (Hình 5A). Đối với độ lệch chuẩn độ phân bố kích thước hồng cầu (RDW-SD), vào cuối giai đoạn nuôi không có stress nhiệt, cả bốn nhóm bổ sung SP và BC đều có giá trị cao hơn đáng kể so với nhóm đối chứng (P < 0,05). Tuy nhiên, sau khi tiếp xúc với nhiệt độ cao, RDW-SD ở nhóm bổ sung 2% SP cao hơn đáng kể so với bốn nhóm còn lại (P < 0,05) (Hình 5B). Số lượng tiểu cầu (PLT) ở cả bốn nhóm bổ sung SP và BC cao hơn đáng kể so với nhóm đối chứng (Hình 5C). Nhìn chung, các chỉ tiêu RDW-CV, RDW-SD và PLT chịu ảnh hưởng đáng kể của khẩu phần ăn, điều kiện nhiệt độ cũng như sự tương tác giữa hai yếu tố này (Bảng 3).
3.4. Những thay đổi về hình thái mô học
3.4.1. Những thay đổi về hình thái mô học của ruột
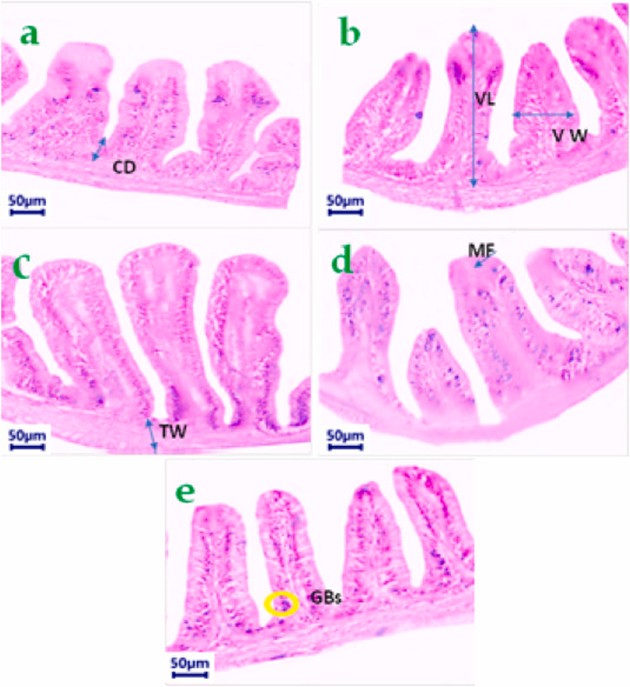
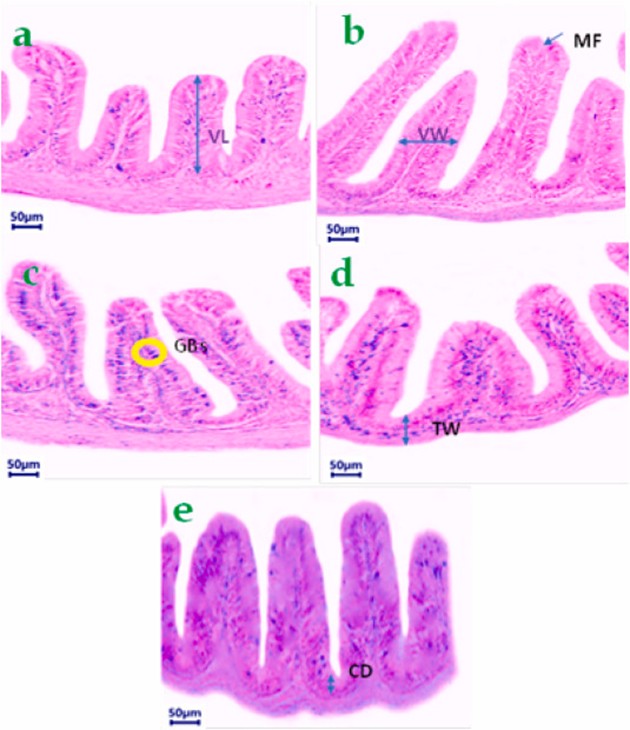
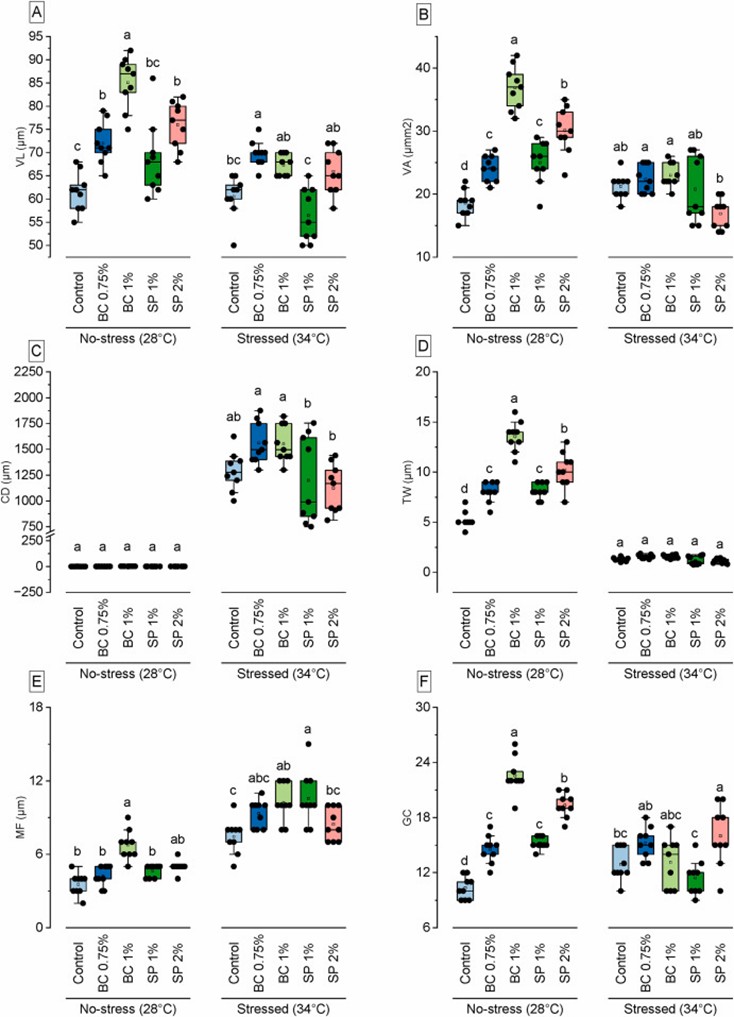
Các chỉ tiêu mô học đường ruột, bao gồm chiều dài nhung mao (VL), chiều rộng nhung mao (VW), diện tích nhung mao (VA), độ dày thành ruột (TW), chiều cao nếp gấp niêm mạc (MF), độ sâu hố tuyến (CD) và số lượng tế bào hình đài (GC), được đánh giá sau 35 ngày nuôi bằng các khẩu phần thí nghiệm và 15 ngày tiếp xúc với nhiệt độ cao (34 °C) (Hình 6 và Hình 7). Sau 35 ngày nuôi ở nhiệt độ 28 °C, chiều dài nhung mao (VL) và diện tích nhung mao (VA) ở các nhóm được bổ sung Spirulina và hạt thì là đen đều cao hơn đáng kể so với nhóm đối chứng (P < 0,05). Trong đó, nhóm bổ sung 0,75% BC có giá trị VL và VA cao nhất (Hình 8A và B). Độ sâu hố tuyến (CD) không bị ảnh hưởng đáng kể bởi các khẩu phần thí nghiệm trong giai đoạn nuôi ở 28 °C. Tuy nhiên, sau khi tiếp xúc với nhiệt độ cao, giá trị CD tăng đáng kể ở tất cả các nhóm (Hình 8C). Đối với độ dày thành ruột (TW), sau 35 ngày nuôi, cả bốn nhóm bổ sung SP và BC đều có giá trị cao hơn đáng kể so với nhóm đối chứng. Tuy nhiên, vào cuối giai đoạn tiếp xúc với nhiệt độ cao, TW không có sự khác biệt đáng kể giữa năm nhóm khẩu phần (Hình 8D). Tương tự, sau 35 ngày nuôi, chiều cao nếp gấp niêm mạc (MF) và số lượng tế bào hình đài (GC) ở cả bốn nhóm bổ sung SP và BC đều cao hơn đáng kể so với nhóm đối chứng (P < 0,05) (Hình 8E và F). Nhìn chung, các đặc điểm mô học đường ruột chịu ảnh hưởng đáng kể của khẩu phần ăn, nhiệt độ tiếp xúc cũng như sự tương tác giữa hai yếu tố này (P < 0,05) (Bảng 3).
3.5. Những thay đổi về mô học ở buồng trứng
Quá trình phát triển buồng trứng được phân chia thành các giai đoạn riêng biệt dựa trên các đặc điểm sinh lý, hình thái và mô học. Việc xác định các giai đoạn phát triển và trưởng thành của buồng trứng được thực hiện theo hệ thống phân loại do Matsuyama và Matsuyama (1982), Shinkafi và cộng sự (2011) và Das và cộng sự (2023) đề xuất. Trong nghiên cứu mô học buồng trứng này, bốn giai đoạn phát triển được ghi nhận, bao gồm: giai đoạn nhân nhiễm sắc (CN), giai đoạn quanh nhân (PN), giai đoạn tiền trưởng thành (PM) và giai đoạn trưởng thành (M) (Hình 9).
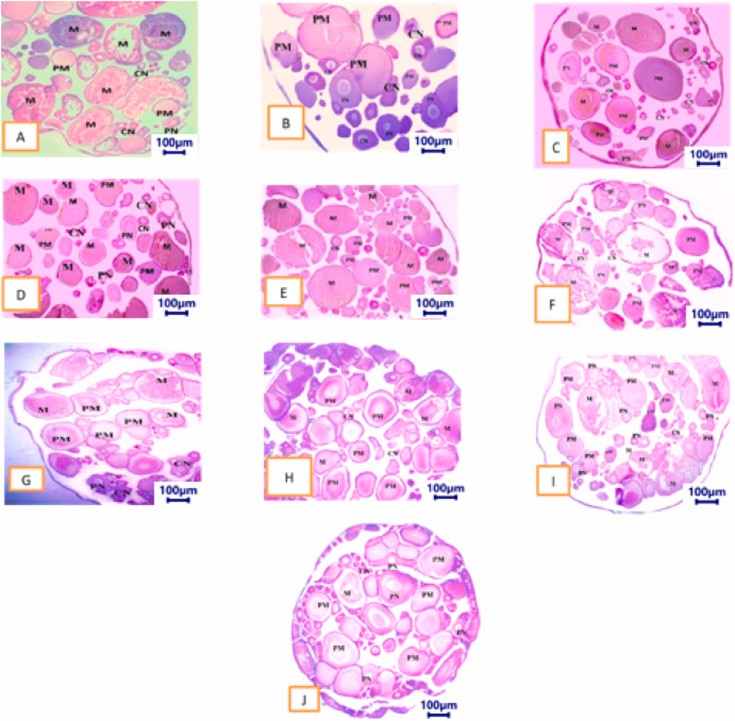
3.5.1. Tỷ lệ phần trăm (%) tần suất các giai đoạn phát triển của noãn bào trong buồng trứng
Vào cuối giai đoạn thử nghiệm cho ăn kéo dài 35 ngày, cá được bổ sung BC và SP vào khẩu phần có tần suất xuất hiện ở giai đoạn CN (%) thấp hơn so với cá ở nhóm đối chứng, mặc dù sự khác biệt không phải lúc nào cũng có ý nghĩa thống kê. Sau 15 ngày tiếp xúc với điều kiện nhiệt độ cao, tần suất giai đoạn CN ở cá được cho ăn khẩu phần bổ sung BC 0,75%, BC 1% và SP 1% cao hơn đáng kể so với nhóm đối chứng (Hình 10A). Đối với giai đoạn PN, sau 35 ngày cho ăn ở 28 °C, tần suất xuất hiện ở cá được bổ sung SP 1% cao hơn đáng kể (P < 0,05). Sau 15 ngày tiếp xúc với nhiệt độ cao, tần suất giai đoạn PN ở cá được bổ sung BC 0,75% và SP 2% cũng cao hơn đáng kể so với các nhóm còn lại (Hình 10B). Đối với hai giai đoạn PM và M, sau 35 ngày cho ăn ở 28 °C, tần suất xuất hiện ở cá được bổ sung BC 0,75%, BC 1% và SP 1% cao hơn đáng kể so với nhóm đối chứng (Hình 10C và D). Sau 15 ngày tiếp xúc với nhiệt độ cao, tần suất giai đoạn PM ở cá được bổ sung BC cũng cao hơn đáng kể (Hình 10C). Nhìn chung, các giai đoạn trưởng thành của tế bào trứng chịu ảnh hưởng đáng kể (P < 0,05) từ khẩu phần ăn, nhiệt độ tiếp xúc và sự tương tác giữa hai yếu tố này (Bảng 3).
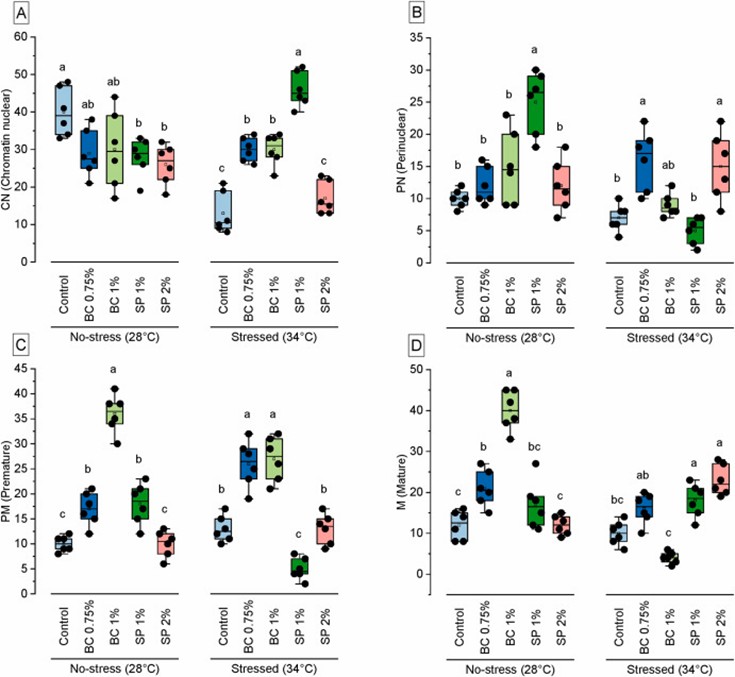
3.5.2. Đường kính của noãn bào ở các giai đoạn phát triển buồng trứng
Sau 35 ngày cho ăn ở nhiệt độ 28 °C, đường kính tế bào trứng ở giai đoạn CN của cá được bổ sung BC 1% thấp nhất và khác biệt có ý nghĩa thống kê (P < 0,05), tiếp theo lần lượt là các nhóm SP 1%, BC 0,75% và SP 2% so với nhóm đối chứng. Ngược lại, sau 15 ngày tiếp xúc với nhiệt độ cao 34 °C, đường kính tế bào trứng ở giai đoạn CN tăng đáng kể (P < 0,05) ở các nhóm cá được bổ sung Spirulina và hạt thì là đen so với nhóm đối chứng. Trong đó, đường kính lớn nhất được ghi nhận ở nhóm bổ sung SP 1% (Hình 11A). Đối với giai đoạn PN, sau 35 ngày cho ăn ở nhiệt độ 28 °C, nhóm đối chứng có đường kính tế bào trứng thấp nhất, với sự khác biệt có ý nghĩa thống kê (P < 0,05). Đường kính tế bào trứng ở giai đoạn này tăng đáng kể (P < 0,05) ở các nhóm được bổ sung BC 0,75%, BC 1%, SP 1% và SP 2%. Trong đó, nhóm SP 1% ghi nhận đường kính lớn nhất so với nhóm đối chứng (Hình 11B). Sau 15 ngày tiếp xúc với nhiệt độ 34 °C, đường kính tế bào trứng ở giai đoạn PN tăng đáng kể (P < 0,05) ở các nhóm được bổ sung BC 0,75% và SP 2%. Đường kính lớn nhất được ghi nhận ở nhóm BC 0,75% so với nhóm đối chứng (Hình 11B). Đối với giai đoạn PM, sau 35 ngày cho ăn ở nhiệt độ 28 °C, đường kính tế bào trứng tăng đáng kể (P < 0,05) ở các nhóm được bổ sung BC 0,75%, BC 1%, SP 1% và SP 2%. Trong đó, nhóm BC 1% có đường kính lớn nhất so với nhóm đối chứng. Sau 15 ngày tiếp xúc với nhiệt độ cao, đường kính tế bào trứng ở giai đoạn PM cũng tăng đáng kể (P < 0,05) ở các nhóm BC 0,75% và BC 1%, với giá trị lớn nhất được ghi nhận ở nhóm BC 1% so với nhóm đối chứng (Hình 11C). Đối với giai đoạn M, vào cuối 35 ngày thử nghiệm cho ăn, đường kính tế bào trứng tăng đáng kể (P < 0,05) ở các nhóm được bổ sung BC 0,75%, BC 1%, SP 1% và SP 2%. Trong đó, nhóm SP 2% ghi nhận đường kính lớn nhất so với nhóm đối chứng. Sau 15 ngày tiếp xúc với nhiệt độ cao, đường kính tế bào trứng ở giai đoạn M tăng đáng kể (P < 0,05) ở các nhóm SP 1% và SP 2%, trong đó nhóm SP 2% có giá trị lớn nhất so với nhóm đối chứng (Hình 11D). Nhìn chung, các giai đoạn phát triển của buồng trứng chịu ảnh hưởng đáng kể từ cả nghiệm thức khẩu phần ăn và điều kiện nhiệt độ (Bảng 3).
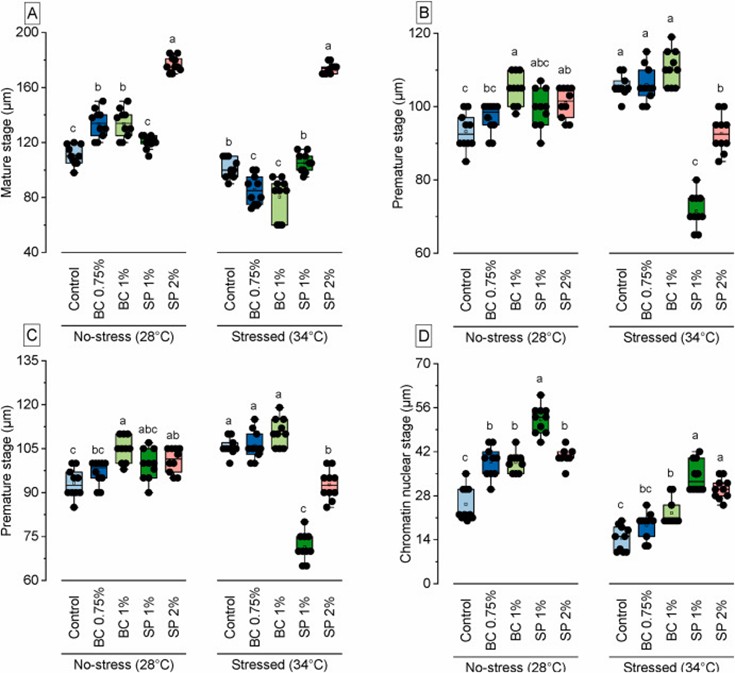
3.5.3.Các dị tật về hình thái mô học buồng trứng
Những biến đổi về hình thái mô học ở buồng trứng cá rô phi được ghi nhận trong nghiên cứu này cho thấy việc tiếp xúc với nhiệt độ cao (34 °C) gây ra những bất thường về cấu trúc buồng trứng, bao gồm hình dạng không đồng nhất, sự hình thành các hốc trong mô và sự suy giảm số lượng tế bào trứng trưởng thành (Hình 12).
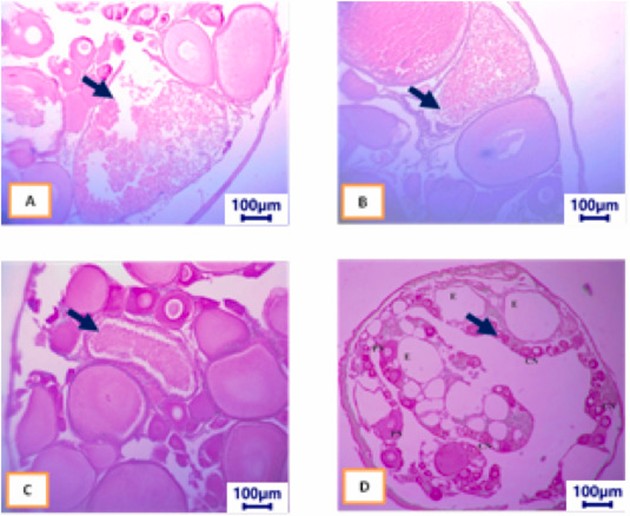
3.6. Mối tương quan giữa các thông số đo được và phân tích DCA
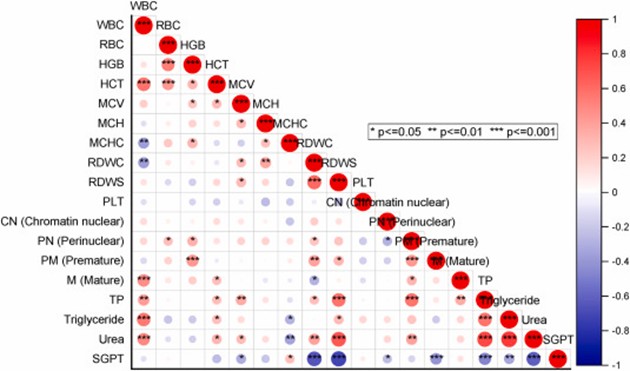
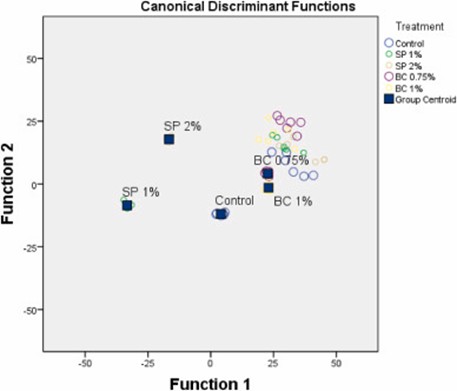
Kết quả phân tích cho thấy WBC, M, HCT, TP, triglyceride, PN, RDW-SD và urê có mối tương quan thuận mạnh với nhau (Hình 13). Biểu đồ phân tích phân biệt (DCA) dựa trên toàn bộ dữ liệu đo lường cho thấy các nhóm thử nghiệm được phân tách và tập hợp thành những cụm rõ rệt (Hình 14). Hai hàm phân biệt chính tắc đầu tiên (hàm 1 và hàm 2) giải thích 90% tổng mức biến thiên, đồng thời cho thấy khả năng phân loại và phân biệt rõ ràng giữa các nhóm khẩu phần ăn (Hình 14).
…Còn tiếp…
Theo Sumaiya Binte Ayesha, Md Jakiul Islam, Most. Shammi Akter Mimi, Mst. Sabrina Akter Sheuly, Tasnia Islam Auditi, Md Kabir Hossain, Kizar Ahmed Sumon, Md Shahjahan, Md Shah Alam, Harunur Rashid
Nguồn: https://www.sciencedirect.com/science/article/pii/S2468550X26000183
Biên dịch: Nguyễn Thị Quyên – Tôm Giống Gia Hoá Bình Minh
Đọc thêm:
- Phần 1: Tăng Cường Sức Đề Kháng Cho Cá Rô Phi: Tinh Dầu Chùm Ngây Cải Thiện Sự Phát Triển, Cấu Trúc Đường Ruột, Khả Năng Miễn Dịch Bẩm Sinh, Khả Năng Chống Oxy Hóa Và Khả Năng Chịu Đựng Amoniac Ở Cá Rô Phi
- Phần 2: Tăng Cường Sức Đề Kháng Cho Cá Rô Phi: Tinh Dầu Chùm Ngây Cải Thiện Sự Phát Triển, Cấu Trúc Đường Ruột, Khả Năng Miễn Dịch Bẩm Sinh, Khả Năng Chống Oxy Hóa Và Khả Năng Chịu Đựng Amoniac Ở Cá Rô Phi
- Hàm Lượng Vitamin E Trong Khẩu Phần Ăn Của Cá Rô Phi Ảnh Hưởng Đến Chất Lượng Phi Lê
SẢN PHẨM PHỤC VỤ NỀN NÔNG NGHIỆP XANH
TIN TỨC NỔI BẬT
Phần 2: Việc Bổ Sung Tảo Xoắn Và Hạt Thì Là Đen Vào Khẩu Phần Ăn Giúp Giảm Thiểu Căng Thẳng Do Nhiệt Độ Quá Cao Ở Cá Rô Phi (Oreochromis niloticus)
3. Kết quả 3.1. Hiệu suất tăng trưởng và thể lực cá thể Sau 35 [...]
Th11
Phần 1: Việc Bổ Sung Tảo Xoắn Và Hạt Thì Là Đen Vào Khẩu Phần Ăn Giúp Giảm Thiểu Căng Thẳng Do Nhiệt Độ Quá Cao Ở Cá Rô Phi (Oreochromis niloticus)
Tóm tắt Biến đổi khí hậu toàn cầu làm gia tăng nhiệt độ bề mặt [...]
Th11
Phần 3: Bệnh Edwardsiellosis Trong Nuôi Cá Rô Phi: Tác Động, Thách Thức Và Những Đổi Mới Để Kiểm Soát Bền Vững
6. Thách thức kinh tế Tại Brazil, Tavares-Dias và Martins (2017) ước tính thiệt hại [...]
Th11
Phần 2: Bệnh Edwardsiellosis Trong Nuôi Cá Rô Phi: Tác Động, Thách Thức Và Những Đổi Mới Để Kiểm Soát Bền Vững
3. Phương pháp phát hiện và chẩn đoán E. tarda được xem là một tác [...]
Th11
Phần 1: Bệnh Edwardsiellosis Trong Nuôi Cá Rô Phi: Tác Động, Thách Thức Và Những Đổi Mới Để Kiểm Soát Bền Vững
Tóm tắt Nuôi trồng thủy sản thường xuyên đối mặt với nguy cơ bùng phát [...]
Th11
Phần 3: Bột Vỏ Cam Được Sử Dụng Như Một Chất Bổ Sung Thức Ăn Chức Năng, Giúp Giảm Thiểu Tác Động Của Kim Loại Nặng Và Tăng Cường Hiệu Suất Tăng Trưởng, Khả Năng Miễn Dịch Và Tình Trạng Chống Oxy Hóa Ở Cá Rô Phi (Oreochromis niloticus) Con Được Nuôi Trong Nước Bị Ô Nhiễm Kim Loại Nặng
4. Thảo luận Các thành phần cấu trúc của tế bào thực vật, đặc biệt [...]
Th11
Phần 2: Bột Vỏ Cam Được Sử Dụng Như Một Chất Bổ Sung Thức Ăn Chức Năng, Giúp Giảm Thiểu Tác Động Của Kim Loại Nặng Và Tăng Cường Hiệu Suất Tăng Trưởng, Khả Năng Miễn Dịch Và Tình Trạng Chống Oxy Hóa Ở Cá Rô Phi (Oreochromis niloticus) Con Được Nuôi Trong Nước Bị Ô Nhiễm Kim Loại Nặng
3. Kết quả 3.1. Tác dụng làm giảm sự hấp thụ kim loại nặng Tất [...]
Th11
Phần 1: Bột Vỏ Cam Được Sử Dụng Như Một Chất Bổ Sung Thức Ăn Chức Năng, Giúp Giảm Thiểu Tác Động Của Kim Loại Nặng Và Tăng Cường Hiệu Suất Tăng Trưởng, Khả Năng Miễn Dịch Và Tình Trạng Chống Oxy Hóa Ở Cá Rô Phi (Oreochromis niloticus) Con Được Nuôi Trong Nước Bị Ô Nhiễm Kim Loại Nặng
Tóm tắt Nghiên cứu này nhằm đánh giá hiệu quả của bột vỏ cam (orange [...]
Th11
Phần 3: Tác Dụng Của Bột Sâm Đại Hành Eleutherine bulbosa Đối Với Khả Năng Sinh Sản, Hiệu Suất Tăng Trưởng, Hệ Vi Sinh Vật Đường Ruột Và Khả Năng Kháng Bệnh Của Ấu Trùng Cá Rô Phi (Oreochromis niloticus) Chống Lại Nhiễm Trùng Aeromonas hydrophila
4. Thảo luận 4.1.Estradiol và hormone vitellogenin E. bulbosa chứa nhiều hợp chất hoạt tính [...]
Th10
Phần 2: Tác Dụng Của Bột Sâm Đại Hành Eleutherine bulbosa Đối Với Khả Năng Sinh Sản, Hiệu Suất Tăng Trưởng, Hệ Vi Sinh Vật Đường Ruột Và Khả Năng Kháng Bệnh Của Ấu Trùng Cá Rô Phi (Oreochromis niloticus) Chống Lại Nhiễm Trùng Aeromonas hydrophila
3. Kết quả 3.1. Estradiol và hormone vitellogenin Việc bổ sung bột E. bulbosa đã [...]
Th10
Phần 1: Tác Dụng Của Bột Sâm Đại Hành Eleutherine bulbosa Đối Với Khả Năng Sinh Sản, Hiệu Suất Tăng Trưởng, Hệ Vi Sinh Vật Đường Ruột Và Khả Năng Kháng Bệnh Của Ấu Trùng Cá Rô Phi (Oreochromis niloticus) Chống Lại Nhiễm Trùng Aeromonas hydrophila
Chú thích: Aeromonas hydrophilaRf = là chủng vi khuẩn kháng thuốc kháng sinh Rifampicin Tóm [...]
Th10
Phần 2: Tăng Cường Sức Đề Kháng Cho Cá Rô Phi: Tinh Dầu Chùm Ngây Cải Thiện Sự Phát Triển, Cấu Trúc Đường Ruột, Khả Năng Miễn Dịch Bẩm Sinh, Khả Năng Chống Oxy Hóa Và Khả Năng Chịu Đựng Amoniac Ở Cá Rô Phi
3. Kết quả 3.1. Hiệu suất tăng trưởng và sử dụng thức ăn Bảng 2 [...]
Th10