
 English
 中文 (中国)
3. Kết quả
3.1. Hiệu suất tăng trưởng
Sau 80 ngày cho ăn, trọng lượng (1,59 ± 0,26 kg) và tốc độ tăng trọng trong 80 ngày (0,91 ± 0,26) ở nhóm đối chứng (CG) cao hơn đáng kể so với nhóm đối chứng (FBG) (lần lượt là 1,08 ± 0,18 kg và 0,40 ± 0,18) (P < 0,05). Tuy nhiên, chiều dài cơ thể không thay đổi đáng kể. (Bảng 3).
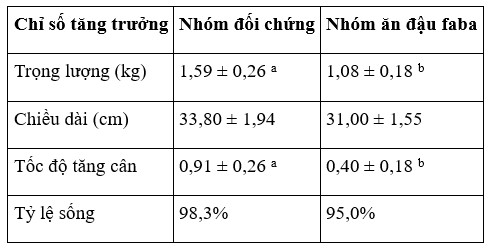
Lưu ý: Các chỉ số trên khác nhau trong cùng một hàng biểu thị sự khác biệt đáng kể (P < 0,05).
3.2. Kết cấu cơ
Độ cứng cơ (767,41 ± 229,53 g), độ đàn hồi (0,30 ± 0,04), độ dẻo (336,63 ± 82,85 g), độ dai (7,45 ± 2,03 mJ) và chỉ số độ dai (190,68 ± 51,94 g) ở nhóm FBG cao hơn đáng kể so với nhóm CG, với các giá trị lần lượt là 400,37 ± 160,00 g (độ cứng), 0,25 ± 0,04 (độ đàn hồi), 180,76 ± 58,23 g (độ dẻo) và 101,22 ± 33,42 g (chỉ số độ dai) (P < 0,05). Độ cứng, độ đàn hồi, độ dẻo và độ dai là những chỉ số quan trọng về kết cấu thịt trong quá trình tiêu thụ. Tuy nhiên, độ bám dính cơ ở nhóm FBG (0,02 ± 0,02 mJ) thấp hơn đáng kể so với nhóm CG (0,04 ± 0,02 mJ) (P < 0,05). Không có sự khác biệt đáng kể nào được quan sát thấy về lực bám dính, độ kết dính, độ đàn hồi và chỉ số độ đàn hồi giữa nhóm CG và FBG (P > 0,05) (Bảng 4).
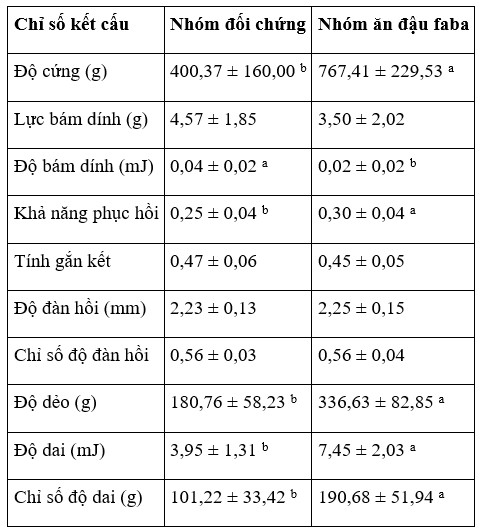
Lưu ý: Các chỉ số trên khác nhau trong cùng một hàng biểu thị sự khác biệt đáng kể (P < 0,05).
3.3. Cấu trúc vi mô của các sợi cơ
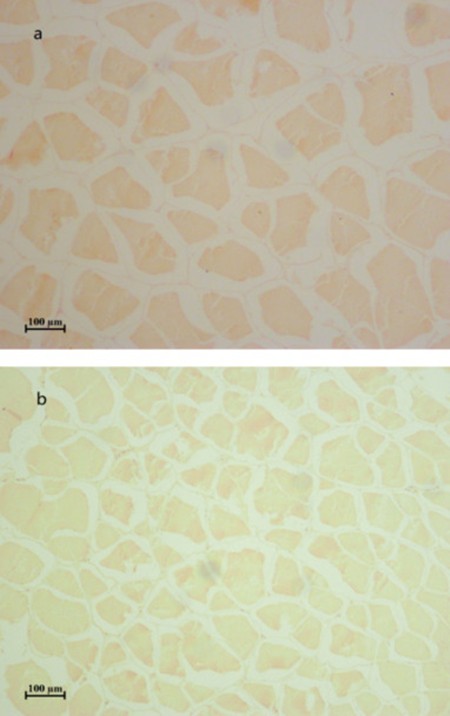
Nhóm FBG cho thấy sự gia tăng đáng kể cả về mật độ sợi cơ (63,6 ± 13,3 NO./mm²) và tỷ lệ diện tích sợi cơ (54,4 ± 0,1%) (P < 0,05) so với nhóm CG (49,7 ± 11,3 NO./mm² và 48,1 ± 0,1%). Ngược lại, đường kính sợi cơ ở nhóm FBG (93,0 ± 12,1 μm) thấp hơn đáng kể (P < 0,05) so với nhóm CG (120,5 ± 23,2 μm) (Hình 1, Bảng 5).
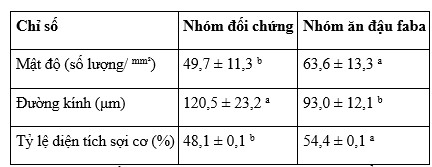
Lưu ý: Các chỉ số trên khác nhau trong cùng một hàng biểu thị sự khác biệt đáng kể (P < 0,05).
3.4. Tổng hàm lượng collagen trong cơ
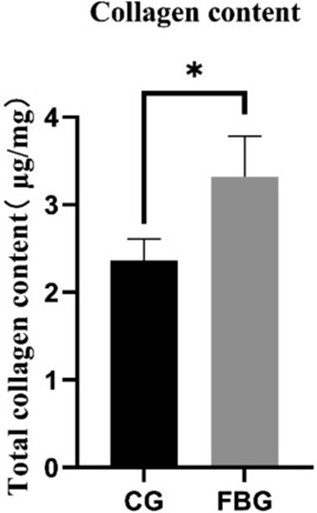
Vì sự tích tụ quá mức collagen được gọi là xơ hóa, nên tổng hàm lượng collagen đã được đo và sử dụng làm dấu ấn sinh học cho bệnh xơ hóa. Hàm lượng collagen của nhóm FBG (3,5 ± 0,6 μg/mg) cao hơn đáng kể so với nhóm CG (2,4 ± 0,2 μg/mg) (P < 0,05) (Hình 2).
3.5. Giải trình tự transcriptome cơ
3.5.1. Chất lượng dữ liệu RNA-seq
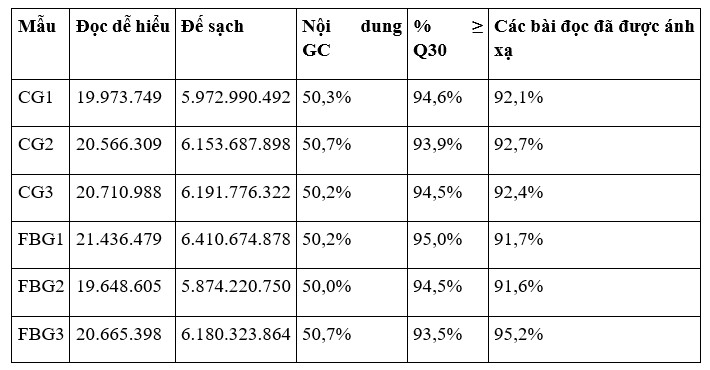
Các số liệu thống kê về chất lượng giải trình tự transcriptome được trình bày trong Bảng 6. Khoảng 20 triệu lượt đọc sạch đã được thu được trên mỗi mẫu sau khi lọc cả CG và FBG. Đánh giá chất lượng dữ liệu cho thấy tỷ lệ giá trị khối lượng base bằng hoặc lớn hơn Q30, cho thấy độ chính xác nhận dạng base là 99,9%, vượt quá 93,5%. Hiệu quả so sánh các lượt đọc từ mỗi mẫu với bộ gen tham chiếu dao động từ 91,6% đến 95,3%, cho thấy dữ liệu giải trình tự có chất lượng cao và phù hợp cho phân tích tiếp theo.
3.5.2. Phân tích các gen biểu hiện khác biệt (DEGs)
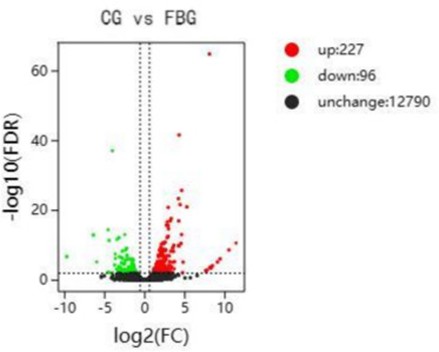
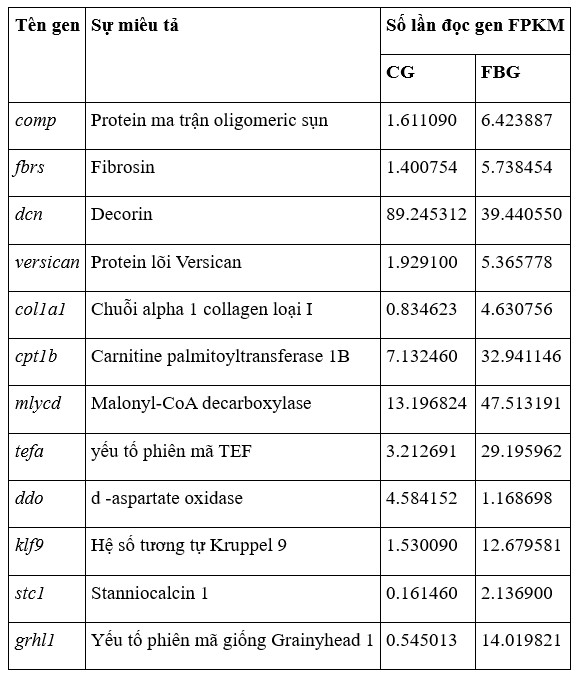
Phân tích các gen biểu hiện khác biệt (DEG) được minh họa trong Hình 3. So với nhóm đối chứng (CG), nhóm FBG cho thấy 323 DEG, bao gồm 227 gen được điều chỉnh tăng và 96 gen được điều chỉnh giảm. 12 DEG đáng chú ý, bao gồm các gen liên quan đến xơ hóa (col1α1, comp, fibrosin và versican) và gen chống xơ hóa decorin, được trình bày trong Bảng 7.
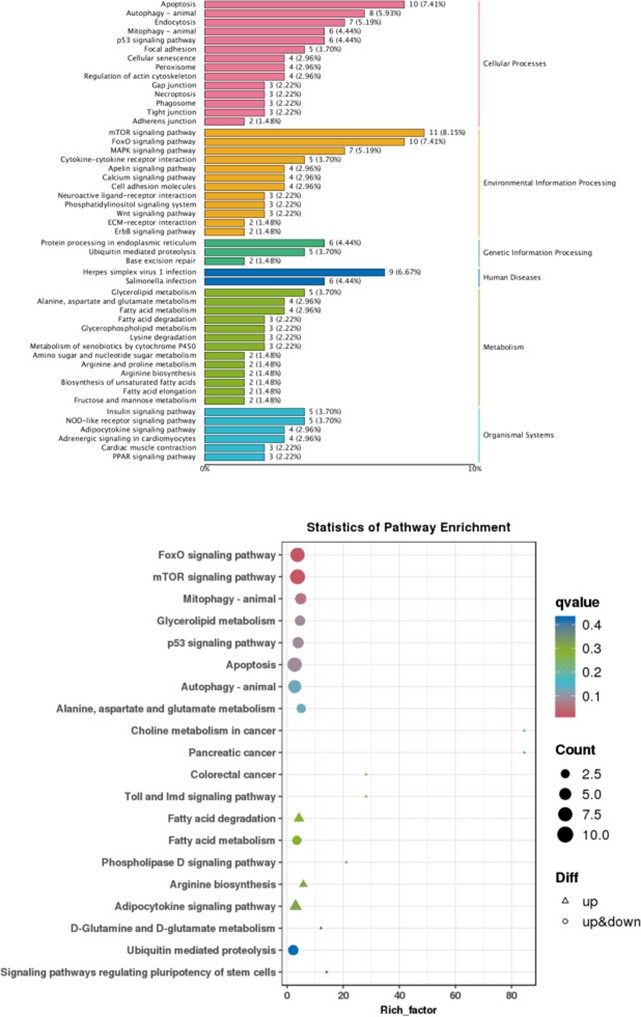
Phân loại và chú thích cho thấy các DEG này chủ yếu liên quan đến quá trình apoptosis, tự thực bào ở động vật, nội bào, tự thực bào ty thể ở động vật, con đường tín hiệu p53, con đường tín hiệu mTOR (giá trị q <0,05), con đường tín hiệu FoxO (giá trị q <0,05) và tương tác giữa cytokine và thụ thể cytokine (Hình 4) .
3.5.3. Xác thực dữ liệu transcriptome
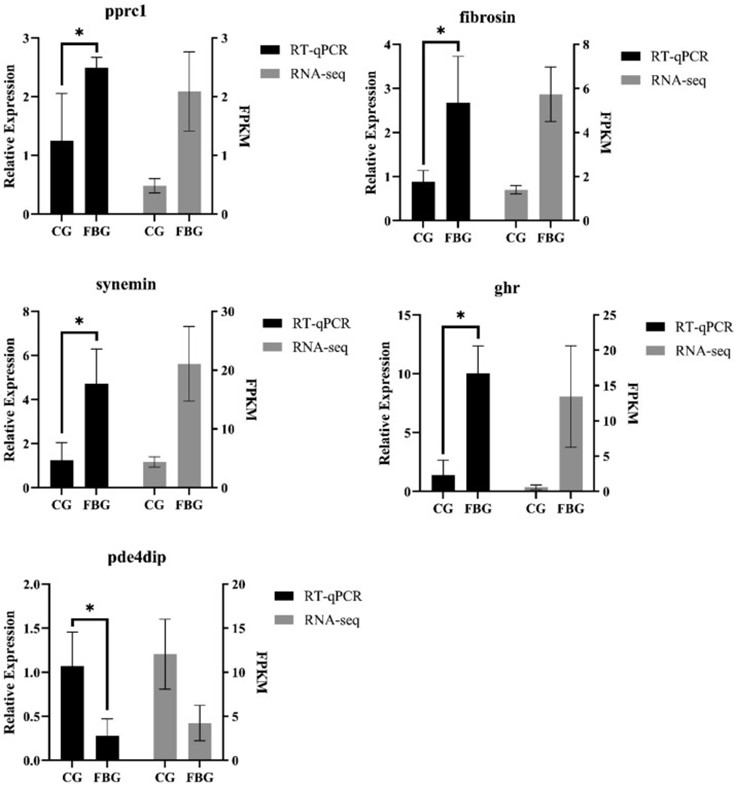
Năm gen biểu hiện khác biệt (DEG) được chọn ngẫu nhiên và phân tích bằng RT-qPCR để xác nhận độ chính xác của kết quả giải trình tự transcriptome. Mức độ biểu hiện tương đối của năm gen này được so sánh với mức độ thu được từ RNA-seq. Kết quả cho thấy xu hướng biểu hiện nhất quán, cho thấy kết quả giải trình tự transcriptome đáng tin cậy (Hình 5).
3.6. Biểu hiện gen liên quan đến xơ cơ
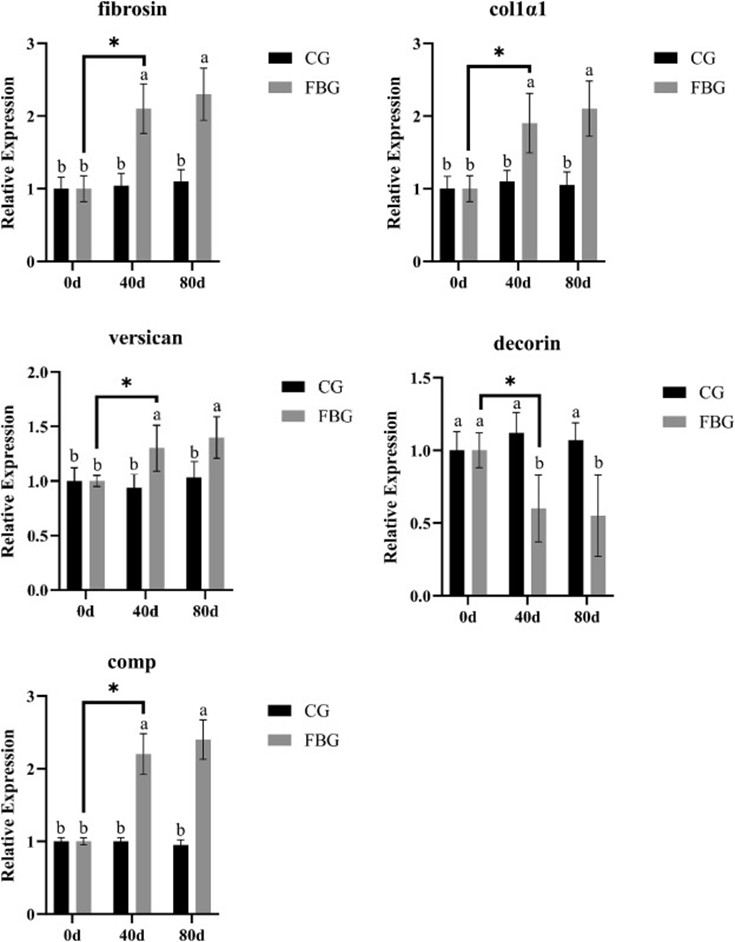
Để làm rõ vai trò của các gen liên quan đến xơ hóa (cũng được coi là dấu ấn sinh học của xơ hóa) trong quá trình xơ hóa trong quá trình cho ăn, chúng tôi đã đánh giá sự biểu hiện của các gen này trong cơ của cả nhóm đối chứng (CG) và nhóm được cho ăn đậu faba (FBG) ở các thời điểm 0, 40 và 80 ngày. Kết quả cho thấy, trong cơ của cá rô phi được cho ăn đậu faba trong 40 và 80 ngày, mức độ biểu hiện của các gen col1α1, comp, fibrosin và versican cao hơn đáng kể so với nhóm đối chứng (CG) (P < 0,05). Ngược lại, mức độ biểu hiện của decorin giảm (P < 0,05). Thêm vào đó, mức độ biểu hiện của col1α1, comp, fibrosin, versican và decorin thay đổi đáng kể giữa 0 và 40 ngày ở nhóm FBG, trong khi không có sự khác biệt đáng kể nào được quan sát thấy giữa 0 và 40 ngày ở nhóm CG (P < 0,05) (Hình 6) .
4. Thảo luận
Việc sử dụng đậu faba trong khẩu phần ăn của cá rô phi đã được chứng minh có ảnh hưởng bất lợi đến hiệu suất tăng trưởng. Kết quả nghiên cứu cho thấy trọng lượng cơ thể và tốc độ tăng trọng của cá rô phi ở nhóm được cho ăn đậu faba thấp hơn đáng kể so với nhóm đối chứng. Hiện tượng này có thể được giải thích bởi một số nguyên nhân. Thứ nhất, đậu faba có thành phần axit amin chưa cân đối. Các nghiên cứu cho thấy các loại đậu nói chung có hàm lượng axit amin chứa lưu huỳnh, bao gồm tryptophan, cysteine và methionine, tương đối thấp (Rahate et al., 2021). Thứ hai, đậu faba chứa nhiều yếu tố kháng dinh dưỡng, bao gồm các hợp chất hoạt tính sinh học như axit phytic, saponin, lectin, vicine, convicine và chất ức chế protease (Labba et al., 2021). Những hợp chất này có thể gây ảnh hưởng bất lợi đến vật nuôi thông qua việc làm giảm khả năng hấp thụ chất dinh dưỡng ở đường ruột. Chẳng hạn, axit phytic có thể làm hạn chế khả năng sử dụng khoáng chất của cơ thể (Kumar et al., 2023). Trong nghiên cứu này, sự gia tăng đáng kể các chỉ tiêu về đặc tính kết cấu, bao gồm độ cứng, độ đàn hồi, độ dẻo, độ dai và chỉ số nhai, sau khi cho cá rô phi ăn đậu faba cho thấy mối liên hệ giữa các thông số này với độ giòn của cơ. Việc bổ sung đậu faba được ghi nhận làm tăng đáng kể độ cứng, độ đàn hồi, độ kết dính, độ dẻo, độ dai và độ đàn hồi của cơ (Fu et al., 2023). Tương tự, ở cá chép cỏ, các chỉ tiêu kết cấu gồm độ cứng, độ đàn hồi, độ dai và độ kết dính của nhóm được cho ăn đậu faba cũng cao hơn đáng kể so với nhóm đối chứng. Hệ số tương quan giữa độ cứng, độ đàn hồi, độ dai và độ bám dính với độ giòn đều lớn hơn 0,91, cho thấy mối tương quan chặt chẽ giữa các chỉ tiêu này và độ giòn của cơ (Yu et al., 2017a). Nhìn chung, độ cứng, độ dẻo và độ dai của cơ có mối liên hệ chặt chẽ với độ giòn của cơ. Ba chỉ tiêu kết cấu này có thể được sử dụng như những chỉ số đáng tin cậy để định lượng độ giòn của cơ.
Việc bổ sung đậu faba vào khẩu phần ăn của cá được ghi nhận làm giảm đường kính sợi cơ và đồng thời tăng mật độ sợi cơ (Yu et al., 2017a). Tương tự, cá rô phi chiên giòn cũng cho thấy sự gia tăng ma trận liên cơ giữa các sợi cơ, đi kèm với sự giảm diện tích mặt cắt ngang và tăng mật độ sợi cơ (Li et al., 2023). Kết quả của nghiên cứu này phù hợp với các phát hiện trên, khi cá rô phi thuộc nhóm FBG có mật độ sợi cơ tăng và đường kính sợi cơ giảm. Kết quả phân tích transcriptome cho thấy các gen biểu hiện khác biệt (DEG) được điều chỉnh tăng ở nhóm FBG chủ yếu liên quan đến con đường FoxO, trong khi các DEG được điều chỉnh giảm liên quan đến con đường mTOR. Những thay đổi này có thể dẫn đến sự giảm tổng hợp protein, gia tăng quá trình phân giải protein và thúc đẩy hoạt động tự thực bào. Trong con đường tín hiệu FoxO, quá trình phân giải protein chủ yếu được điều hòa thông qua hệ thống ubiquitin–proteasome (UPS) và hệ thống tự thực bào–lysosome (Sun et al., 2025).
UPS là một cơ chế quan trọng trong quá trình phân giải protein và duy trì cân bằng nội môi của tế bào. Hệ thống này có tính chọn lọc cao, tham gia điều hòa nhiều quá trình tế bào thông qua cơ chế ubiquitin hóa và phân giải protein tại proteasome (Zhao et al., 2022). Trong khi đó, hệ thống tự thực bào–lysosome đóng vai trò là cơ chế quan trọng trong phân giải và tái chế nội bào, chịu trách nhiệm loại bỏ các bào quan bị tổn thương, protein bị gấp sai và các thành phần tế bào dư thừa (Sun et al., 2025). Bên cạnh đó, con đường mTOR giữ vai trò quan trọng trong điều hòa quá trình tổng hợp protein. Sự mất khối lượng cơ thường đi kèm với sự suy giảm hoạt động của mTOR, trong khi hoạt động của mTOR được tăng cường trong quá trình phì đại cơ. Sự lắng đọng protein, được quyết định bởi sự cân bằng giữa tổng hợp và phân giải protein, sẽ bị thay đổi khi cân bằng này trong cấu trúc cơ bị phá vỡ. Những biến đổi này được biểu hiện thông qua sự gia tăng mật độ sợi cơ và giảm đường kính sợi cơ (Wang & Zhang, 2019). Tương tự, sự mất cân bằng trong quá trình tích luỹ protein có thể góp phần làm chậm sự tăng trưởng của cá rô phi, đồng thời liên quan đến sự gia tăng mật độ và đường kính sợi cơ ở cá rô phi.
Chất nền ngoại bào (ECM) là một thành phần quan trọng của cơ xương, do đó những thay đổi về thành phần ECM có thể ảnh hưởng đáng kể đến cấu trúc cơ (Csapo et al., 2020). Collagen là protein cấu trúc chủ yếu của ECM, giữ vai trò quan trọng trong việc nâng đỡ và duy trì sự sắp xếp của các tế bào cơ (Sahani et al., 2024). Hàm lượng, loại collagen và đặc điểm cấu trúc của collagen là những yếu tố quan trọng có ảnh hưởng đáng kể đến cấu trúc cơ ở cá (Sahani et al., 2024). Sự gia tăng nồng độ của các thành phần ECM, đặc biệt là tình trạng tích tụ collagen quá mức, là một đặc điểm điển hình của quá trình xơ hóa (Antar et al., 2023). Xơ hóa là một quá trình bệnh lý mãn tính, được nghiên cứu nhiều ở gan (Kisseleva & Brenner, 2021). Đặc trưng của quá trình này là sự lắng đọng ECM và sự tăng sinh bất thường của mô liên kết trong gan sau nhiều dạng tổn thương gan mãn tính khác nhau (Kisseleva & Brenner, 2021). Tình trạng hoại tử viêm kéo dài hoặc tái diễn ở nhu mô gan do bệnh gan mãn tính có thể thúc đẩy sự tăng sinh mô liên kết và lắng đọng chất nền ngoại bào (Kisseleva & Brenner, 2021). Trong nghiên cứu này, tổng hàm lượng collagen trong cơ cá rô phi ở nhóm được cho ăn đậu faba tăng đáng kể. Sự gia tăng này có thể liên quan đến quá trình xơ hóa cơ và ảnh hưởng đến sự hình thành cơ bắp săn chắc.
Chuỗi alpha 1 của collagen loại I (col1α1) mã hóa collagen loại I và có khả năng điều hòa quá trình tổng hợp, lắng đọng collagen trong chất nền ngoại bào (ECM) (Yu et al., 2019). Collagen loại I là loại collagen chiếm tỷ lệ cao nhất trong ECM (Zhou et al., 2024). Protein ma trận oligomeric sụn (COMP) là một glycoprotein không collagen trong ECM, có khả năng tương tác với nhiều loại protein khác nhau của ECM (Magdaleno et al., 2016). COMP có ái lực cao với collagen loại I và II, đồng thời đóng vai trò quan trọng trong quá trình liên kết ban đầu giữa các phân tử collagen, qua đó thúc đẩy sự hình thành các sợi collagen (Andréasson et al., 2017). Fibrosin là một cytokine liên quan đến quá trình xơ hóa và đóng vai trò quan trọng trong cơ chế bệnh sinh của một số bệnh lý xơ hóa. Protein này đặc biệt có liên quan đến các bệnh như bệnh sán máng, xơ gan do rượu và xơ cứng bì (Li et al., 2021). Versican là một proteoglycan chondroitin sulphate và là thành phần quan trọng của ECM (Sasi et al., 2023). Protein này tham gia điều hòa quá trình xơ hóa và là thành phần quan trọng của chất nền tăng sinh xơ trong giai đoạn đầu của bệnh xơ phổi (Bukong et al., 2015). Decorin hoạt động như một chất ức chế tự nhiên của TGF-β1, ngăn cản sự tương tác của TGF-β1 với các thụ thể thúc đẩy quá trình xơ hóa (Zhang et al., 2018). Đồng thời, decorin có khả năng ức chế sự biểu hiện của các protein liên quan đến xơ hóa do TGF-β1 gây ra trong ECM của tế bào dây chằng vàng ở người (Wang et al., 2023a). Trong nghiên cứu này, hàm lượng collagen và mức độ biểu hiện của các gen liên quan đến xơ hóa, bao gồm col1α1, versican, comp và fibrosin, đều tăng đáng kể trong cơ cá rô phi ở nhóm FBG so với nhóm CG. Ngược lại, biểu hiện của gen decorin, một gen có tác dụng chống xơ hóa, thấp hơn đáng kể ở nhóm FBG. Những kết quả này cho thấy việc bổ sung đậu faba vào khẩu phần ăn của cá rô phi có thể thúc đẩy quá trình lắng đọng collagen trong cơ, từ đó có khả năng ảnh hưởng đến tình trạng xơ hóa và cải thiện chất lượng cấu trúc cơ của cá rô phi (Hình 7). Các nghiên cứu trước đây đã ghi nhận rằng biểu hiện col1α1 trong cơ tăng đáng kể và có mối tương quan thuận với độ dai của cơ khi bổ sung đậu faba vào khẩu phần ăn của cá chép cỏ (Tang et al., 2024) và cá rô phi (Peng et al., 2022). Sự thiếu hụt COMP có thể dẫn đến sự hình thành các sợi collagen không đều và làm giảm độ cứng của mô ở gia súc (Halász et al., 2007). Ngược lại, sự gia tăng biểu hiện COMP thúc đẩy các sợi collagen sắp xếp theo hướng chịu lực và đan xen có trật tự với các sợi cơ, qua đó tối ưu hóa độ cứng và độ đàn hồi của cơ (Posey et al., 2018). Những kết quả này phù hợp với phát hiện của nghiên cứu hiện tại về sự gia tăng biểu hiện col1α1, COMP và sự cải thiện chất lượng cấu trúc cơ. Bên cạnh đó, sự giảm biểu hiện của gen chống xơ hóa decorin có thể dẫn đến sự sắp xếp chặt chẽ hơn của các sợi cơ, qua đó cải thiện chất lượng cấu trúc cơ ở chuột (Robinson et al., 2017). Kết quả này cũng củng cố mối liên hệ giữa sự giảm biểu hiện decorin và sự cải thiện chất lượng cấu trúc cơ, đồng thời cho thấy sự sắp xếp chặt chẽ hơn của các sợi cơ có thể liên quan đến quá trình lắng đọng collagen trong chất nền ngoại bào (ECM).
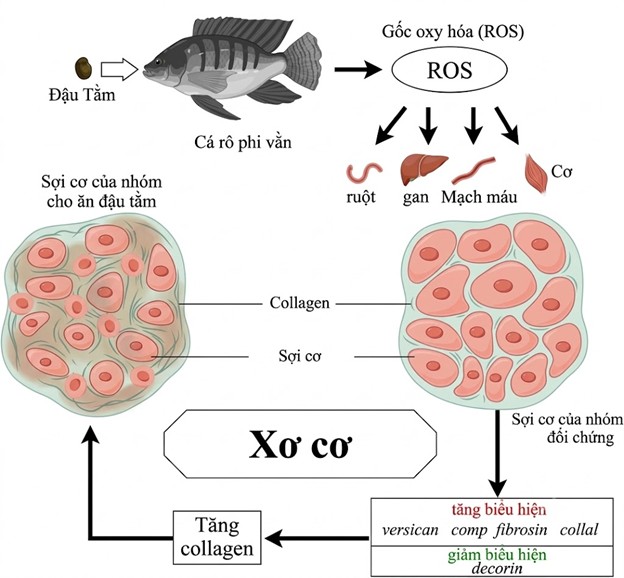
Mặc dù nghiên cứu ghi nhận mối tương quan nhất định giữa xơ hóa cơ và sự hình thành kết cấu cơ giòn, các bằng chứng hiện có vẫn chưa đủ để xác lập mối quan hệ nhân quả trực tiếp giữa hai hiện tượng này. Nguyên nhân là do xơ hóa cơ chủ yếu liên quan đến quá trình lắng đọng collagen, trong khi sự hình thành kết cấu cơ giòn là một quá trình phức tạp, có sự tham gia của cấu trúc sợi cơ, quá trình lắng đọng collagen và chuyển hóa axit béo (Wang et al., 2023b). ROS được cho là đóng vai trò tín hiệu điều hòa ở thượng nguồn đối với những thay đổi về sinh lý và sinh hóa này. Một hạn chế khác của nghiên cứu là thành phần của thức ăn công thức thương mại được sử dụng làm đối chứng khác với thành phần của đậu faba, vốn là một sản phẩm nông nghiệp sơ cấp có thành phần không ổn định. Do đó, thành phần cụ thể trong đậu faba có ảnh hưởng đến kết cấu cơ vẫn chưa được xác định.
5. Kết luận
Tóm lại, kết quả nghiên cứu cho thấy việc bổ sung đậu faba vào khẩu phần ăn của cá rô phi làm suy giảm đáng kể hiệu suất tăng trưởng, đồng thời cải thiện hàm lượng collagen và cấu trúc cơ. Sự biểu hiện của nhiều gen liên quan đến quá trình xơ hóa cũng có sự thay đổi. Cụ thể, các gen liên quan đến xơ hóa như col1α1, comp, fibrosin và versican được tăng cường biểu hiện, trong khi gen có chức năng chống xơ hóa decorin lại giảm biểu hiện sau khi cá được cho ăn đậu faba.
Như vậy, việc sử dụng đậu faba trong khẩu phần ăn thúc đẩy sự tích lũy collagen trong cơ cá rô phi, qua đó thúc đẩy quá trình xơ hóa cơ và làm thay đổi chất lượng cấu trúc cơ. Những phát hiện này cung cấp một hướng tiếp cận mới trong nghiên cứu cải thiện chất lượng cá. Tuy nhiên, cơ chế phân tử chính xác underlying sự thay đổi cấu trúc cơ vẫn còn phức tạp. Do đó, cần có thêm các nghiên cứu kết hợp công nghệ đa omics và mô hình nuôi cấy tế bào để xác định các gen điều hòa chủ chốt, từ đó hỗ trợ thiết kế các chương trình lai tạo ở cấp độ phân tử nhằm tạo ra những dòng cá có chất lượng cấu trúc cơ được cải thiện trong tương lai.
Theo Ning-xin Guo, Wen-bin Luo, Jin-hua Gao, Gazahegn-Wakjira Yadata, Xiao-li Yao, Zhi-chao Meng, Yan Zhao, Jin-liang Zhao
Nguồn: https://www.sciencedirect.com/science/article/pii/S2666566225000760
Biên dịch: Nguyễn Thị Quyên – Tôm Giống Gia Hoá Bình Minh
Đọc thêm:
- Phần 1: Đánh Giá Tác Động Của Việc Bổ Sung Lá Ổi (Psidium guajava) Lên Hiệu Suất Tăng Trưởng, Tình Trạng Chống Oxy Hóa Và Các Thông Số Huyết Học Của Cá Rô Phi (Oreochromis niloticus)
- Phần 2: Đánh Giá Tác Động Của Việc Bổ Sung Lá Ổi (Psidium guajava) Lên Hiệu Suất Tăng Trưởng, Tình Trạng Chống Oxy Hóa Và Các Thông Số Huyết Học Của Cá Rô Phi (Oreochromis niloticus)
- Nghiên Cứu Sò Lụa (Paratapes undulata) Trở Thành Giải Pháp Tự Nhiên Để Kiểm Soát Bệnh Vibriosis Trong Nuôi Cá Rô Phi
SẢN PHẨM PHỤC VỤ NỀN NÔNG NGHIỆP XANH
TIN TỨC NỔI BẬT
Phần 2: Tác Dụng Của Đậu Faba (Vicia faba L.) Đối Với Cấu Trúc Cơ Và Các Chỉ Dấu Sinh Học Của Xơ Hóa Ở Cá Rô Phi (Oreochromis niloticus)
3. Kết quả 3.1. Hiệu suất tăng trưởng Sau 80 ngày cho ăn, trọng lượng [...]
Th10
Phần 1: Tác Dụng Của Đậu Faba (Vicia faba L.) Đối Với Cấu Trúc Cơ Và Các Chỉ Dấu Sinh Học Của Xơ Hóa Ở Cá Rô Phi (Oreochromis niloticus)
Tóm tắt Cá rô phi (Oreochromis niloticus) có thịt giòn là một loại cá có [...]
Th10
Cơ Sở Lý Thuyết Của Dấu Chân Nước: Các Thành Phần, Phạm Vi Và Ứng Dụng Trong Quản Lý Nguồn Nước
Trong bối cảnh môi trường toàn cầu đang ngày càng chịu nhiều áp lực, quản [...]
Th10
Cà Mau: Giải Pháp Xử Lý Bùn Đáy Ao Ngay Từ Đầu Vụ
Thủ phủ tôm Cà Mau đang đối mặt với vấn đề quá tải bùn đáy [...]
Th10
Phần 2: Đánh Giá Tác Động Của Việc Bổ Sung Lá Ổi (Psidium guajava) Lên Hiệu Suất Tăng Trưởng, Tình Trạng Chống Oxy Hóa Và Các Thông Số Huyết Học Của Cá Rô Phi (Oreochromis niloticus)
3. Kết quả 3.1. Các thông số lý hóa của nước Các thông số chất [...]
Th10
Cà Mau: Bùn Đất Cải Tạo Ao Tôm Sẽ Đưa Đi Đâu?
Trong giai đoạn từ 15/8 đến 15/10 dương lịch hàng năm, Cà Mau bước vào [...]
Th10
Cà Mau: Những Điều Cần Lưu Ý Về Sên Vét Ao, Đầm Nuôi Trồng Thủy Sản
Tại Cà Mau, khi thực hiện sên, vét ao, đầm nuôi thủy sản, người dân [...]
Th10
Phần 1: Đánh Giá Tác Động Của Việc Bổ Sung Lá Ổi (Psidium guajava) Lên Hiệu Suất Tăng Trưởng, Tình Trạng Chống Oxy Hóa Và Các Thông Số Huyết Học Của Cá Rô Phi (Oreochromis niloticus)
Tóm tắt Nghiên cứu đánh giá ảnh hưởng của bột lá ổi (Psidium guajava) bổ [...]
Th10
Lá Đước Phân Hủy Như Thế Nào Khi Rụng Xuống Ao Tôm?
Lá đước rụng là một phần tự nhiên của hệ sinh thái ao nuôi tôm [...]
Th10
Phần 2: Phân Tích So Sánh Sự Phát Triển Phôi Và Hiệu Quả Tăng Trưởng Giữa Hai Loài Cua Bùn Và Các Con Lai Của Chúng
3. Kết quả 3.1. Sự khác biệt về hình thái phôi Sự phát triển phôi [...]
Th9
Phần 1: Phân Tích So Sánh Sự Phát Triển Phôi Và Hiệu Quả Tăng Trưởng Giữa Hai Loài Cua Bùn Và Các Con Lai Của Chúng
Tóm tắt Trong nuôi trồng thủy sản hiện đại, lai khác loài (inter-specific hybridization) được [...]
Th9
Thu Hoạch Tôm Theo Quy Trình Cân Bằng Sinh Học
Thu hoạch tôm là điểm cuối của quá trình nuôi tại ao nhưng chưa phải [...]
Th9